
907 份样本中建立 256 个可持续扩增模型
英国韦尔科姆桑格研究所(Wellcome Sanger Institute)与 5 个临床中心合作,建立覆盖结直肠癌、食管癌、卵巢癌、胰腺癌和胃癌的患者来源类器官库。团队在同一设施内处理组织,以标准化培养和质量检查减少不同模型间的流程差异。
2016–2023 年收集的 907 份样本来自 878 位供者,最终建立 256 个模型,整体成功率为 28%。这里的成功要求包括足够扩增以建立冻存库、解冻后继续培养,以及与原肿瘤的身份匹配;短期生长的组织培养不直接计为成功模型。
结直肠癌部分有 132 个模型。库中保留了不同分期、既往治疗和取材部位的临床资料,另有来自 6 位患者的 13 个配对模型,可用于比较治疗前后或不同病变的变化。冻存入库后的模型中,93% 通过冻融质量检查。
基因组资料用于连接模型与原肿瘤
全部 256 个模型均有全基因组测序及供者正常组织参照,171 个还有相应原肿瘤测序,可直接比较模型与组织。团队同时获取转录组资料,用于分型和功能结果解释。
配对比较显示多类基因组特征较一致,但一致程度因指标和样本而异。例如,76 对模型与组织共享至少 75% 的体细胞变异;142 对的全基因组拷贝数相关系数达到 0.5 或以上。原组织中的肿瘤比例会影响这些比较,培养也可能改变内部细胞组成。
模型覆盖了多种常见及少见驱动变异。经过最长 6 个月培养和多次冻融后,整体基因组和转录组特征较稳定,长期培养仍有小幅变化。分子资料、供者资料和模型清单通过公共数据库提供查阅。
162 个模型完成基因依赖性筛选
团队在 162 个模型中完成通过质量检查的全基因组 CRISPR–Cas9 功能筛选,包括 85 个结直肠癌、59 个食管癌、11 个卵巢癌、4 个胰腺癌和 3 个胃癌模型。筛选观察去除不同基因后模型生长是否受损,从而寻找维持肿瘤细胞生长所依赖的基因。
模型中每次筛选识别的这类基因中位数为 1,440 个。分析进一步区分多数模型共同依赖的基因与特定背景下的依赖性,并把结果与基因变异、表达和临床特征对应。
团队识别出 1,841 组显著的基因与标志物关联。例如,部分微卫星不稳定的结直肠癌模型依赖 WRN,但也有 4 个此类模型未显示这一依赖,提示同一大类分型内部仍需要更细的功能比较。
KRAS 变异类型对应不同的药物作用
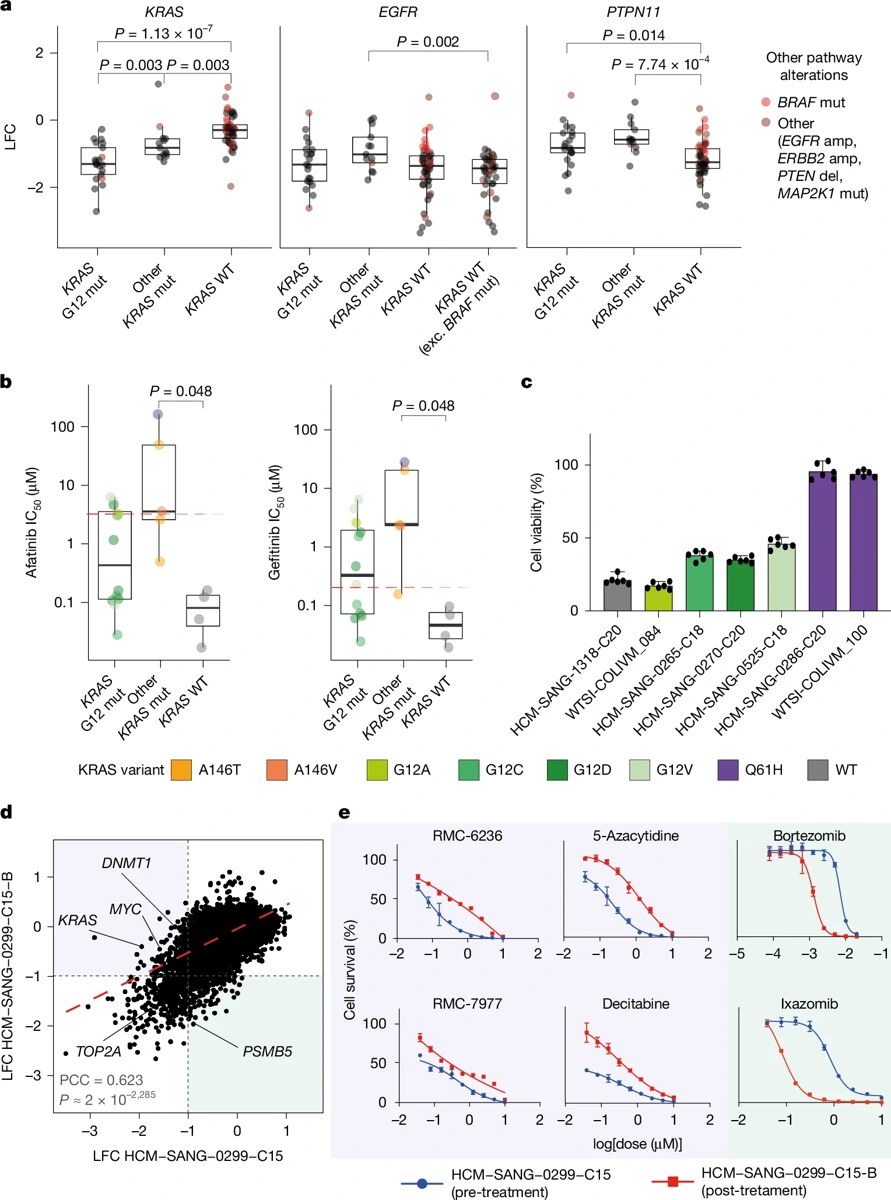
研究在 21 个结直肠癌模型中比较 RAS 和 EGFR 相关药物,其中 17 个带 KRAS 变异,4 个为 KRAS 野生型。药筛采用存活曲线和组合分析,观察基因筛选提示的依赖性是否也能对应实际药物反应。
两种作用于活化 RAS 的广谱抑制剂 RMC-6236、RMC-7977,在这组模型中的平均半数抑制浓度分别为 0.042 和 0.023 μM。作用方式不同的 BI-2865 及 KRAS 降解剂 ACBI3,总体抑制浓度更高。不同药物的作用方式和模型的变异背景共同影响反应。
KRAS 野生型及第 12 位氨基酸变异的部分模型,对 EGFR 抑制更敏感;另一些变异模型的反应较弱。EGFR 与 KRAS 联用在部分模型中产生较强抑制和正式协同分析信号,其他模型未显示同样结果。
1 个 KRAS Q61H 模型对 EGFR 抑制反应不明显,从培养液中移除 EGF 也没有降低其存活,而第 12 位变异或野生型模型对这一改变有反应。基因干预、药物及培养因子试验得到相符结果。
窄屏可横向滑动查看完整图表。
治疗前后配对模型揭示可继续验证的候选药物
1 位食管癌患者的治疗前活检和复发后手术组织形成配对模型。两者均保留 KRAS 扩增,但治疗前模型中的 MYC 扩增在治疗后模型中缺失,部分基因依赖性也发生变化。
治疗后模型对两种 RAS 抑制剂及两种 DNMT1 抑制剂的反应减弱,对硼替佐米和伊沙佐米两种蛋白酶体抑制剂的反应增强。另一个参照药依托泊苷在两模型中的作用相近,使不同靶点的变化得到区分。
本文建立的是可共享的模型与功能资料资源,尚未据此检验新的治疗方案能否改善患者结局。作者提出,后续应增加病理、单细胞和空间资料,并纳入配对间质、免疫及正常组织模型,以研究培养条件和微环境对功能结果的影响。