
人源血管网络在芯片中接受可调流动
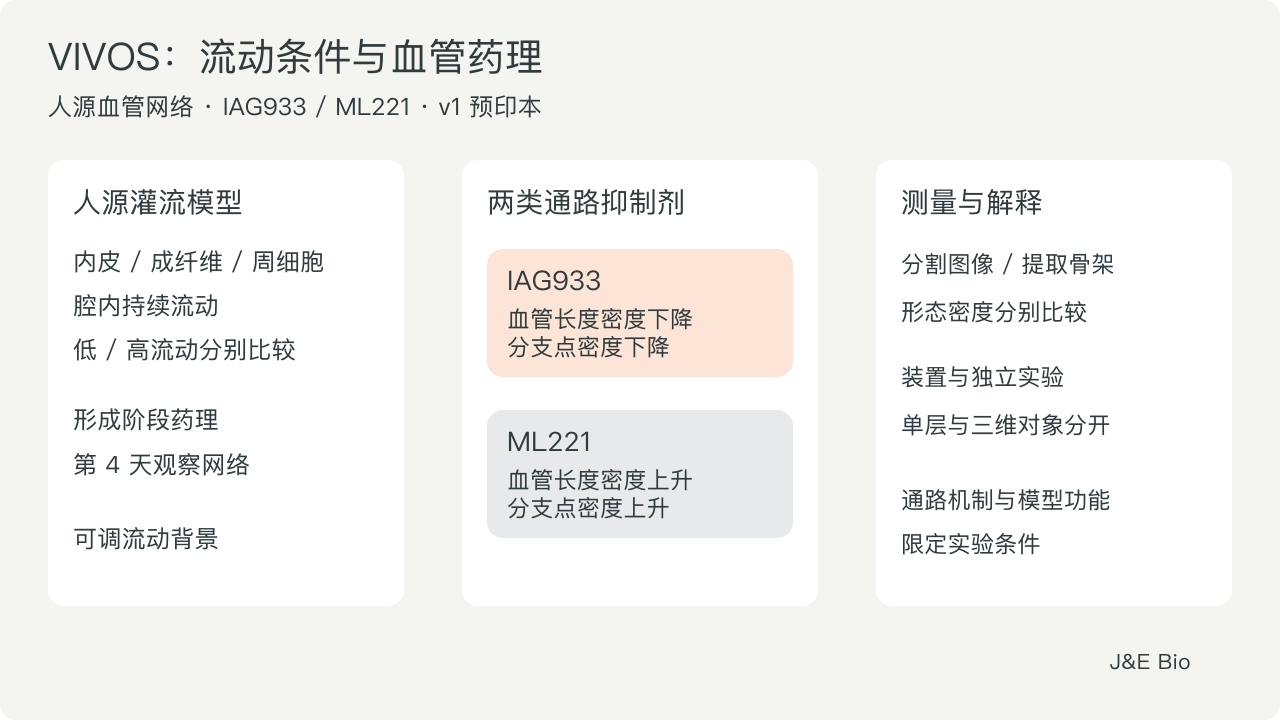
多伦多西奈山医院(Mount Sinai Hospital)的 Lunenfeld–Tanenbaum Research Institute 与多伦多大学(University of Toronto)团队于 2026 年 3 月 24 日公开 VIVOS 的 v1 预印本。平台将人源血管网络与电动叶轮泵连接,使培养液在血管腔内持续流动,并用不同流动条件检查血管结构和细胞状态。
血管网络由人脑微血管内皮细胞、正常人肺成纤维细胞和人脑血管周细胞共同形成,培养环境采用纤维蛋白水凝胶。在间质细胞参与下,内皮细胞在 4–8 天内形成网络。
芯片内高压与低压通道通过多孔膜连接血管区,压力差驱动培养液进入血管腔,再返回低压侧。泵速可以调整,因此流动本身成为药理比较中的实验条件。
流动背景改变血管结构和内皮状态
较高流动条件下,血管长度密度和分支点密度下降。图 5J 的基础比较每种条件包括 11 个装置,来自 6 次独立实验;它使用后续 IAG933 和 ML221 图组数据的子集。
单细胞转录分析提示,高流动时内皮细胞较偏向 APLN 较低、APLN 受体 APLNR 较高的状态。作者用人肿瘤血管生成图谱和标志基因评分,将这些状态与尖端样及柄部样细胞相联系。
团队还在单层内皮细胞中施加剪切应力进行比较。APLN 及 YAP/TAZ 靶基因表达降低,APLNR 表达增加;TAZ 的核内和胞质免疫荧光下降,但 TAZ 转录量没有相应变化。转录测量和蛋白染色因此从不同层面检查了流动条件下的反应。
这类细胞状态来自转录映射和评分,血管形态则由成像直接量化。两层证据从不同角度说明流动与血管形成的关系。
IAG933 与 ML221 对网络形成呈相反影响
作者先在单层内皮细胞中测试 YAP/TAZ–TEAD 抑制剂 IAG933。2 μM、24 小时条件下,APLN 表达下降,APLNR 的表达增加;图 5c 来自 3 次独立实验。
在灌流网络中,2 μM IAG933 从装置播种时开始加入,并随培养液更换维持。第 4 天观察到血管长度密度和分支点密度下降,每种流动条件有 6 个装置,跨 3 次独立实验。
Apelin 受体抑制剂 ML221 采用 10 μM 条件,给入阶段相同。它增加了血管长度密度和分支点密度;第 4 天每种流动条件有 5–6 个装置,跨 3 次独立实验。
两种抑制剂从血管网络形成阶段开始给入,分别减少和增加两项形态密度。作者结合转录分析解释 YAP/TAZ 与 Apelin 信号在出芽和柄部样状态中的不同作用。
APLN 编码配体 Apelin,APLNR 编码其受体。作者提出,YAP/TAZ 较活跃、APLN 较高而 APLNR 较低的细胞偏向出芽;受体较多的柄部样细胞更能响应 Apelin。抑制剂、转录状态与网络成像结果共同用于解释这两类状态的分工。
形态测量与通路分析用于解释网络反应
成像分析先分割血管,再提取网络骨架,计算长度密度和分支点密度。模型提供的是明确流动背景下的人源血管药理比较,可用于检查同一通路干预在不同力学环境中的作用。
作者尚不能解释 Apelin 促进柄部样状态的全部下游过程。另一个实验中,即使先提高 APLNR 表达,Apelin-17 也未直接改变 TAZ 染色;这一阴性结果限制了对信号反馈关系的解释。
这份资料为 v1 预印本,药理比较采用上述装置与实验重复。团队提出进一步研究更多组织和循环细胞参与的系统,并继续解释 Apelin 信号的下游过程。