
直接测量神经元 miRNA,寻找可调节它们的小分子
微小 RNA(microRNA,miRNA)可以通过影响信使 RNA 的稳定性和翻译调节基因表达。美国与中国研究团队在 Nature Communications 报道一种细胞表型筛选,将人诱导多能干细胞(induced pluripotent stem cells,iPSC)来源神经元与小 RNA 测序结合,直接检查化合物对多种 miRNA 的影响。
研究没有先为每一种 miRNA 设置报告系统,而是同时测量表达谱,再选择感兴趣的候选进行复验。团队重点检查 miR-132,因为它参与神经元保护,并在多种 Tau 相关神经退行性疾病中降低。
1,902 种化合物初筛,质控后保留 1,370 种
团队从 36 条供者来源的 iPSC 系中,先考察了 25 条来自无认知障碍供者的细胞系,再选择 BR43 进行初筛。BR43 来自 1 位 89 岁女性供者,其基础 miR-132 表达在重复培养中变化较小,并能对已知诱导条件作出反应。初筛用 1,902 种化合物处理神经元,24 小时后先检查细胞状态,再收集 RNA;每种化合物在初筛中只有 1 次测试。
细胞死亡、神经突退化、细胞流失或测序信号不足的样本被排除。最终数据覆盖 1,370 种化合物及 338 种 miRNA,加上 42 个溶剂对照与 25 个阳性对照,共 1,437 个样本。分析对 6 批数据进行批次校正。
这份资源既可用于寻找某种 miRNA 的调节剂,也可观察同类化合物是否形成相似表达模式。研究将化合物分成 5 个表达反应簇,发现神经信号、细胞骨架或激酶相关化合物各有不同的 miRNA 变化特征。
44 种候选复验,强心苷在两类神经元中增加 miR-132
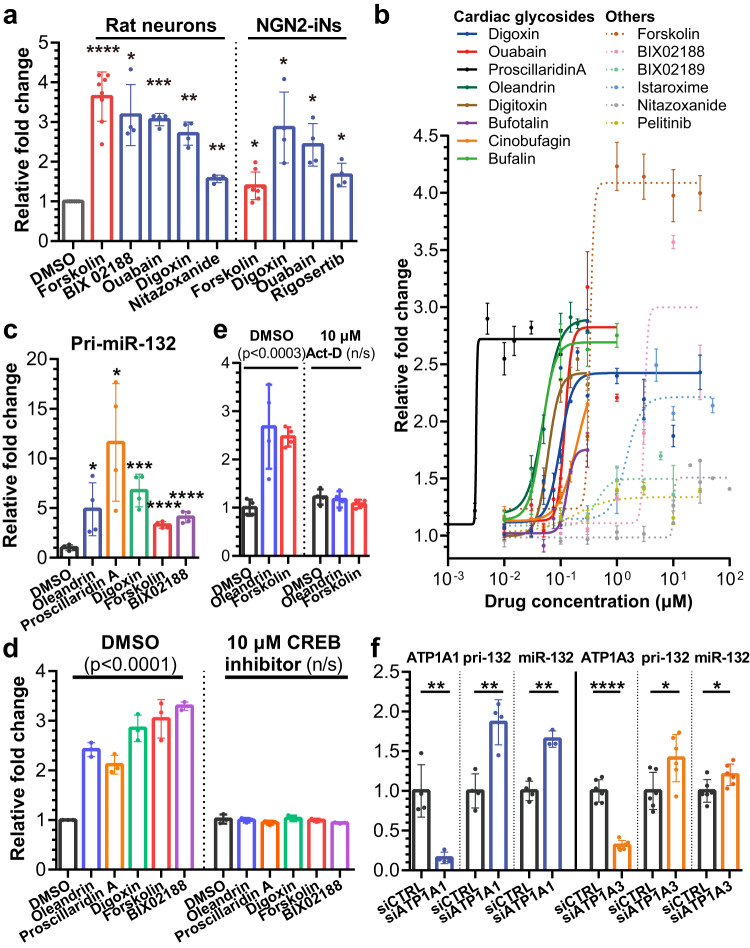
团队根据 miR-132 表达排序及其他药理信息选择 44 种候选,在大鼠原代皮层神经元和人源神经元中复验。24 小时后,分别有 12 种和 4 种化合物显著提高 miR-132;强心苷中的地高辛与哇巴因在两类细胞中均显示作用。
进一步的浓度比较显示,8 种强心苷在大鼠神经元的纳摩尔浓度范围内,可将 miR-132 提高至对照的约 2.5–3 倍。部分强心苷在人源神经元中也呈浓度相关作用;另一候选 BIX02188 在大鼠细胞中的作用较强,在人源神经元中却不稳定。
miR-132 的初始转录本及同一基因位点产生的 miR-212 也增加,转录相关抑制实验支持其涉及表达调控。在大鼠神经元中阻断 miR-132/212 后,强心苷对损伤的保护只部分减弱,提示还有其他途径参与。
大鼠神经元的时间过程也有差别:oleandrin 处理后,miR-132/212 初始转录本约在 8 小时达到高点,成熟 miRNA 则约在 24 小时达到高点,到 72 小时仍约为基础水平的 2 倍。作者观察到,相关靶基因的下降与 miRNA 上升在时间上相应。
窄屏可横向滑动查看完整图表。
Tau 下降需要连同神经元完整性一起判断
人源后续实验采用 Tau P301L 变异携带者及其健康亲属来源的两条神经元系。地高辛、oleandrin 和 proscillaridin A 均使 Tau 及部分磷酸化 Tau 信号随浓度降低,并伴随 MAPT 表达下降。
但高浓度不能简单视为更好。10 μM 条件下,Tau 与磷酸化 Tau 虽降低超过 70%,突触和微管相关标志也会下降;延长暴露后,健康亲属来源神经元对毒性更敏感。研究因此结合多项结构标志与活性检测判断作用范围。
在 Tau P301L 神经元中,团队比较多类应激,包括兴奋性刺激、线粒体抑制与淀粉样肽。化合物预处理后,代谢活性检测信号由受损组约为对照的 25%–60%,恢复至约 75%–95%,成像也支持细胞体和神经突得到保护。这是培养模型中的应激比较。
初始转录本增加与成熟 miRNA 增加的幅度也不相同。作者在讨论中指出,前者可增加约 10–30 倍,后者在相同处理组约增加至 1.5–3 倍,并提出前体加工过程可能限制最终成熟 miRNA 的增加。基因开始转录、成熟 miRNA 形成以及下游蛋白变化,需要分别测量。
单次初筛和窄治疗窗仍需要后续解决
作者明确指出,初筛每种化合物只有 1 次测试,且存在明显批次效应,单个候选可能受到实验误差或细胞变化影响。因此,数据集提供发现线索,具体候选仍须复验。
转录组结果显示,强心苷同时影响多条神经元和应激相关通路,保护作用不能全部归于 miR-132。强心苷本身的治疗窗较窄,若要向神经退行性疾病治疗推进,还需要改善选择性和系统毒性,并在更多人源细胞背景中检验。