
比较传代次数、生成批次与培养时间
患者来源类器官用于干预研究时,需要先知道疾病信号能否跨批次保留。卢森堡大学(University of Luxembourg)团队在 iScience 报道,选用 3 名健康供者和 3 名携带 GBA-N370S 变异的帕金森病患者来源细胞,比较中脑类器官的转录、蛋白及代谢表现。
第一组数据在第 30 天检测 RNA 及免疫荧光,分别来自较早和较晚传代的神经上皮干细胞,各 4 批、共 8 个独立生成批次。第二组另生成 4 批,在第 30 和 60 天检测 RNA 与代谢物。相同供者可贡献多个批次,独立供者仍为每组 3 人。
早传代的疾病表达特征较一致
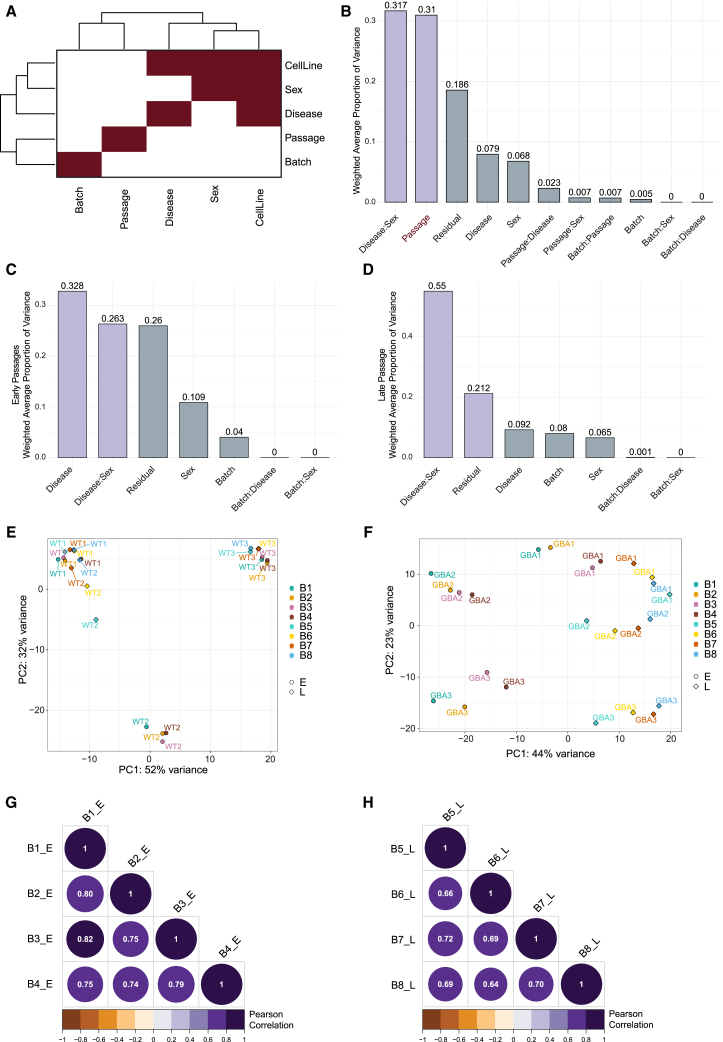
整体转录变异分析中,传代解释的比例为 31%,疾病与性别交互项为 31.7%,单独批次项相对较小。疾病、细胞系和供者性别存在关联,当前资料因而未能独立分离性别的作用。
按神经上皮干细胞传代分层后,早传代约为第 10 至 15 代,晚传代约为第 16 至 20 代;批次项在两层分别占 4% 与 8%。疾病差异基因在早传代批次间的相关系数为 0.74–0.82,晚传代为 0.64–0.72。晚传代仍可保留疾病方向,但一致性较弱。
研究在早传代 4 批中找到 27 个共同差异基因,晚传代各批未得到相同的共同集合。不过,把这 27 个早期选出的基因用于后续比较时,仍能区分健康与疾病模型;另一个独立生成数据集也保留相关特征,第 60 天的分组更清楚。
窄屏可横向滑动查看完整图表。
转录与蛋白表型出现的时间并不完全一致
免疫荧光与三维重建显示,疾病模型的酪氨酸羟化酶(tyrosine hydroxylase,TH)阳性多巴胺神经元指标较低,神经突起较短且分支较少。TH 转录变化在晚传代更不一致,增加批次后才较容易看出组间差异。
衰老相关表现也有层次差别:早传代的转录数据已经出现相关信号,DNA 损伤及衰老相关蛋白 53BP1 的差别则主要在晚传代出现;β-半乳糖苷酶染色也在疾病模型中更强。蛋白与转录层面的表型出现时间因而存在差别。
代谢批次的早期例外在较晚时间减小
多数代谢物变化方向在 4 批模型中相近,但第 30 天的第 4 批明显偏离。前三批疾病对健康变化的相关系数为 0.61–0.86,第 4 批与其他批次约为 0.12;到第 60 天,4 批之间均呈 0.59–0.79 的显著相关。
作者据此推测,个别批次可能暂时沿不同分化路径发展,较成熟时差异减小。整合 RNA 与代谢资料后,样本按疾病状态分组更明显,批次的区分度较低,丙酮酸、尿素、甘氨酸及葡萄糖等反复进入区分两组的重要特征。
样本量估计随检测类型和效应大小变化
一个批次、每组 3 个样本时,研究中的 TH 表达差异没有被检出,说明真实表型也可能因样本少而成为阴性。团队随后按本研究观察到的效应进行统计功效估计:以检出差异的概率达到 80% 为目标,RNA、代谢和 TH 成像的相应每组样本估计约为 30、20 与 50。
上述估计采用本研究观察到的效应大小及统计假设,其适用范围受当前模型和数据限制。成像以单个类器官作为重复,RNA 或代谢检测则将多个类器官合并为样本,实验单位不同。
以 3 条供者细胞系、8 批生成得到的 24 个每组样本为例,批次可以增加实验重复,但独立供者仍只有 3 名。作者明确指出,应优先增加细胞来源;批次可补充稀有来源不足,较少供者带来的人群代表性限制仍然存在。
结果限于该遗传亚型和定向模型
作者认为,控制传代能提高疾病表型的可重复性,早传代更适合获得一致的基线。晚传代可能呈现更多与长期培养或转录老化相关的变化,适合回答不同问题,比较时应将早晚传代分开分析。
当前供者数量较少,且均围绕 GBA-N370S 相关帕金森病。定向中脑模型的变异也可能低于非定向脑类器官;作者建议将早晚传代分开分析,并在其他遗传背景及更均衡的供者组成中继续检验。