
遗传背景与曲美替尼代谢变化
2025 年 7 月 10 日,Oncogene 发表结直肠癌药物代谢研究。格拉斯哥大学(University of Glasgow)等机构团队比较不同 RAS 及 WNT 相关背景的肿瘤模型,寻找 MEK 抑制剂曲美替尼作用下降时,细胞内部发生的代谢变化。
初始机制分析使用果蝇后肠肿瘤,比较仅有 Ras 相关变化的模型,以及额外具有 Apc、p53 相关变化的模型。两组对曲美替尼的响应不同,团队用液相色谱—质谱分析药物处理后的代谢物,从而把遗传背景与代谢状态联系起来。
较低敏感 RAP 模型中共有 143 种代谢物发生变化,葡萄糖醛酸化相关信号富集最强,包括葡萄糖-6-磷酸、UTP、UDP 和 UDP-葡萄糖增加。团队进一步以 UDP 释放作为通路活性指标,检验药物代谢转化与响应的关系。
后续实验进入小鼠肠道肿瘤类器官,检查果蝇中得到的机制能否在另一物种的三维体外模型中观察到。
葡萄糖供应、葡萄糖醛酸化与药物响应
研究分别改变葡萄糖醛酸化通路的多个步骤,比较曲美替尼响应。降低部分相关酶活性后,药物作用改善;相反,提高通路相关活性可削弱原本较敏感模型的响应。
磷酸戊糖途径相关代谢物也发生变化。作者进一步考察它与葡萄糖醛酸化的联系,结果支持细胞的葡萄糖利用及相关底物供应,能够影响药物代谢过程。
不同遗传背景的细胞葡萄糖水平及 PI3K–AKT 相关信号不同。RAS 与 WNT 活性共同提高时,葡萄糖摄取及葡萄糖醛酸化增强,研究通过遗传和药物比较追踪这条关系。
高糖饮食也提高了果蝇肿瘤的 UDP 释放并降低曲美替尼作用。抑制葡萄糖醛酸化后,这种高糖导致的药效下降大部分消失;没有曲美替尼时,相同通路干预未改善肿瘤相关生存。
小鼠肿瘤类器官中的代谢干预与药物响应
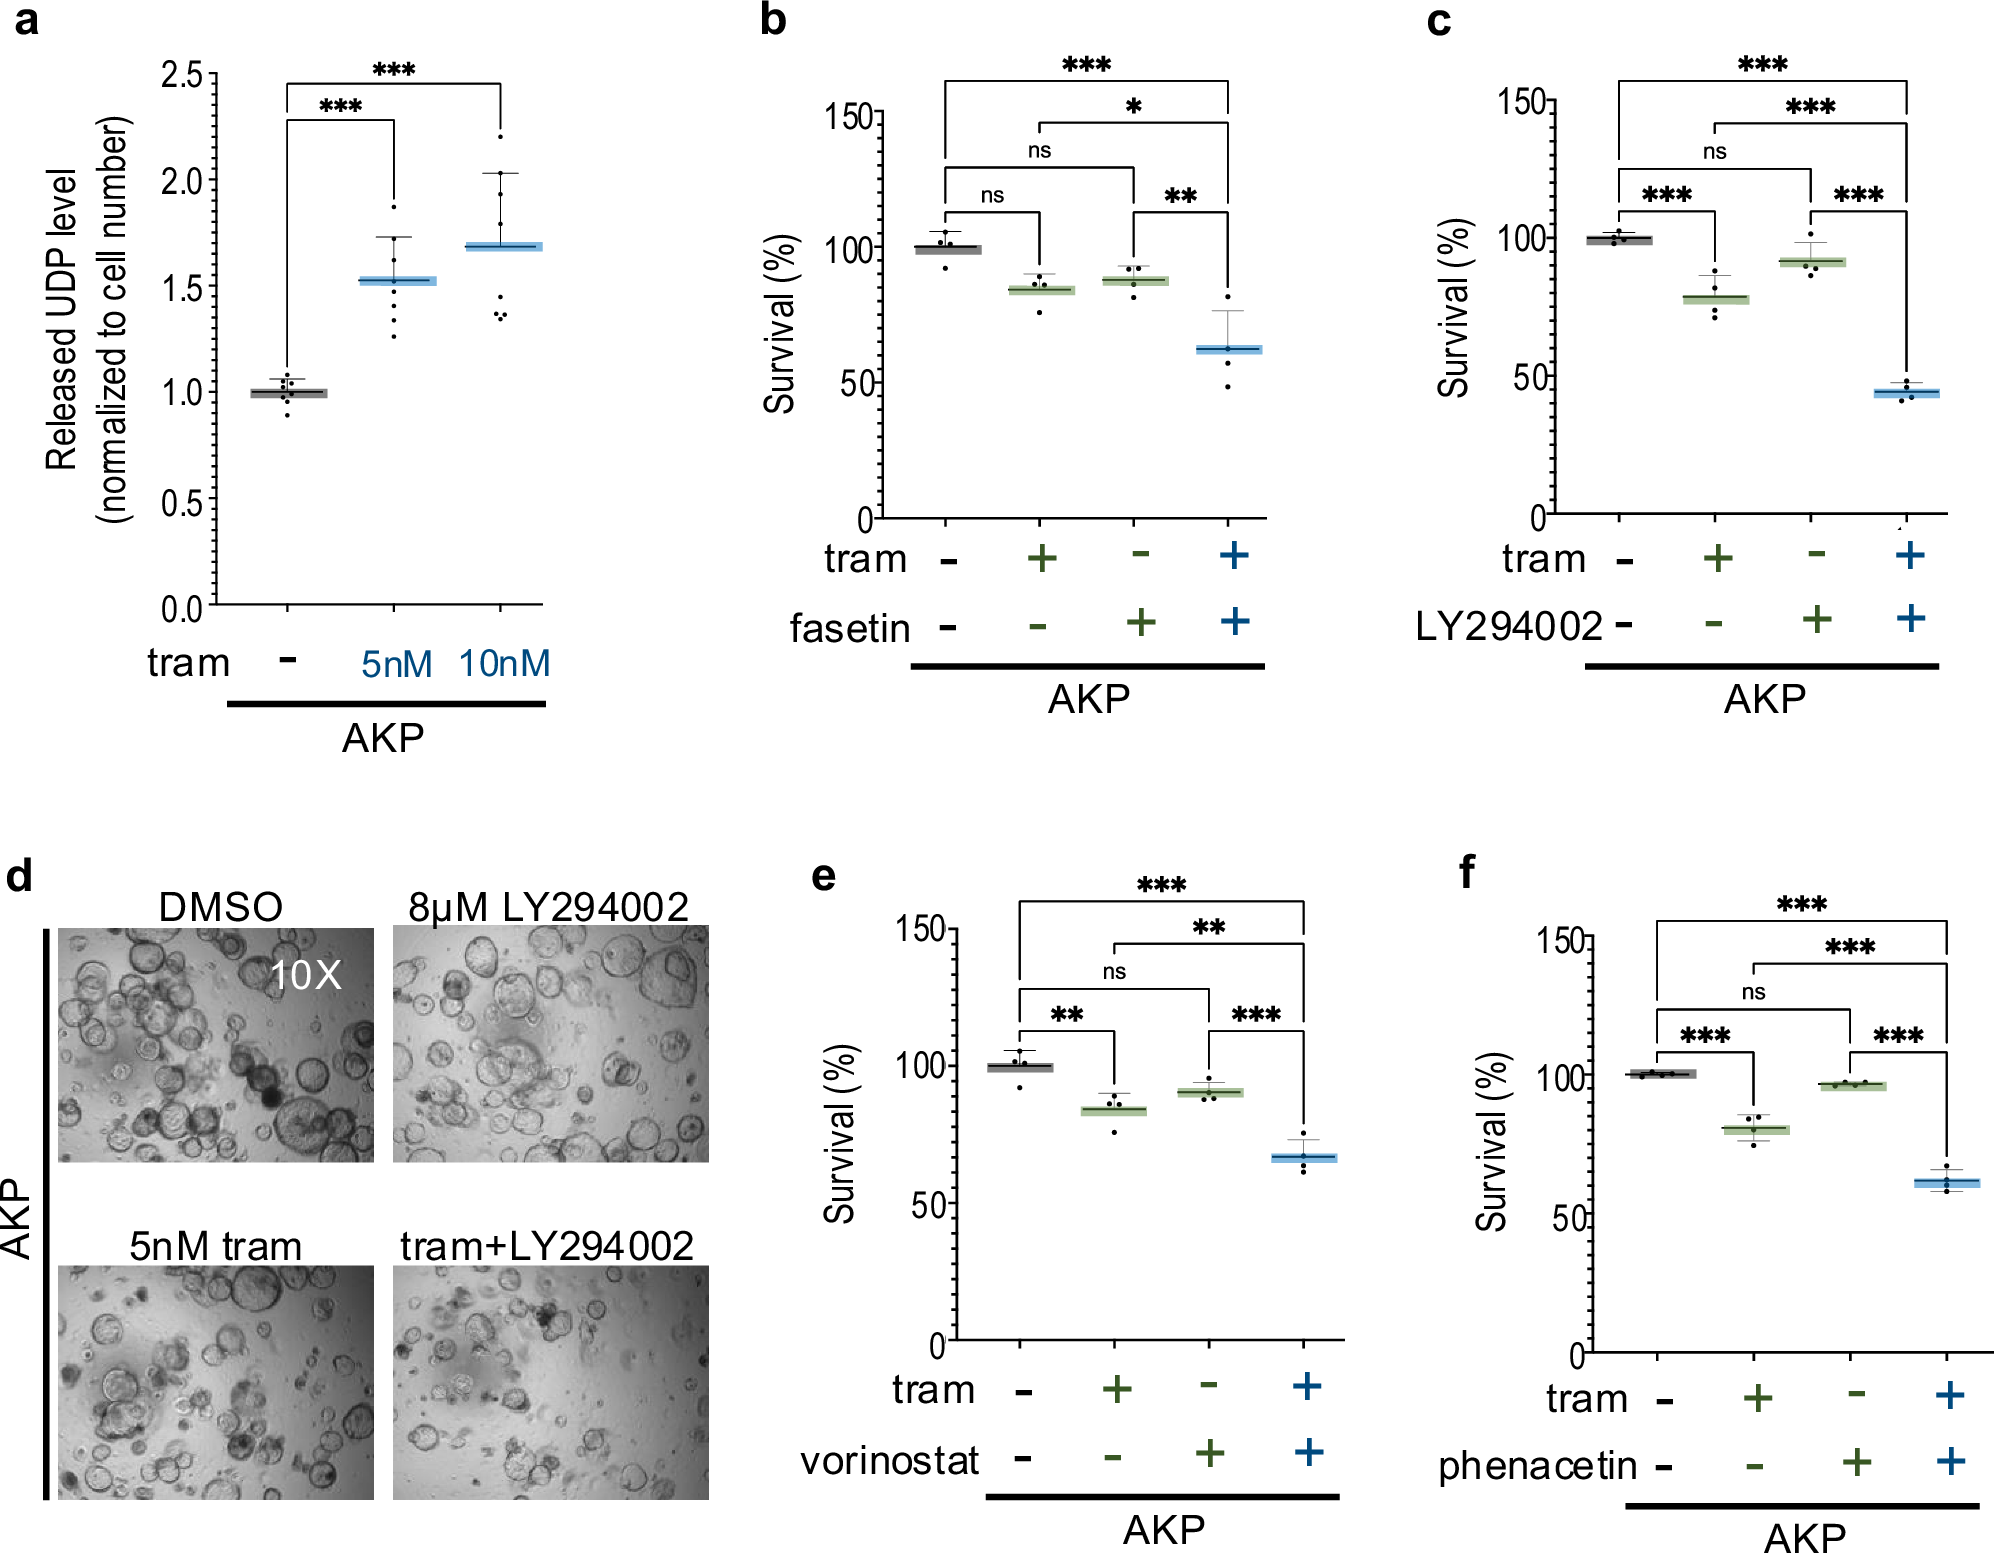
小鼠 AKP 肿瘤类器官具有 Apc、Kras 和 Trp53 相关背景,来源于小肠。研究检测其药物处理后的代谢相关指标,并比较增加底物或抑制通路时的曲美替尼响应。
AKP 类器官对曲美替尼有一定敏感性,增加葡萄糖醛酸化相关底物后,药物响应下降。抑制葡萄糖摄取或 PI3K–AKT 信号则提高了曲美替尼敏感性;这些抑制剂单独使用时,未影响类器官扩增。
曲美替尼去乙酰化与药物组合干预
作者进一步考察曲美替尼葡萄糖醛酸化之前的去乙酰化步骤。在果蝇模型中,降低 HDAC1 后,作为葡萄糖醛酸化指标的 UDP 释放量下降,曲美替尼敏感性提高。HDAC 抑制剂伏立诺他与曲美替尼组合也增强了作用,支持去乙酰化参与这一代谢过程。
团队还使用与曲美替尼经历相似代谢步骤的非那西丁作为竞争性底物。与曲美替尼合用后,果蝇及小鼠类器官的药物敏感性提高;非那西丁单独使用没有相同作用。
另一条干预路径使用阿卡波糖降低葡萄糖供应。在果蝇模型中,阿卡波糖增强了曲美替尼等 MEK 抑制剂的作用,单独使用时未影响肿瘤生长。
另外两种 MEK 抑制剂比美替尼和司美替尼可直接发生葡萄糖醛酸化,果蝇实验中伏立诺他没有增强其作用。
两种果蝇模型的基础 HDAC 活性没有显著差异。作者据此认为,去乙酰化虽是曲美替尼后续代谢的必要步骤,却不足以解释两模型原本的敏感性差别。小鼠 AKP 类器官中,伏立诺他与曲美替尼联用同样增强作用,伏立诺他单药则未抑制扩增。
联合处理抑制果蝇后肠组织增生
果蝇 RAP 模型的后肠增殖区明显增生。曲美替尼与伏立诺他联合处理抑制了这种过度生长,曲美替尼或伏立诺他单独使用的作用均较弱。这与联合处理改善果蝇存活的结果相符。
研究仍未明确磷酸戊糖途径增强葡萄糖醛酸化的完整分子联系。作者提出,患者肿瘤中的其他突变可能改变这套信号网络,后续需要检验能否在患者材料中利用同一机制。