
按肿瘤区域建立模型,再比较免疫反应
同一肺癌内的细胞是否具有不同的免疫逃逸能力,单靠组织成像或测序很难直接判断。荷兰癌症研究所(Netherlands Cancer Institute)、英国弗朗西斯·克里克研究所(The Francis Crick Institute)与伦敦大学学院(University College London)等团队于 2025 年在 Cancer Cell 发表一项多区域类器官研究,通过功能比较追踪同一患者肿瘤内部的差异。
团队从 3 名非小细胞肺癌患者的 11 个空间区域建立模型,进一步获得 81 条克隆亚系。部分区域类器官重现了原组织不同的生长形态,使区域之间和同一区域内部的差异都能分别考察。
其中 2 名患者获得了可用于功能实验的自体肿瘤浸润淋巴细胞(tumor-infiltrating lymphocytes,TIL);第 3 名患者的 TIL 数量不足,研究改用健康供者来源的自然杀伤(natural killer,NK)细胞。两类比较的免疫细胞来源和识别机制因此不同。
区域之间和同一区域内部均有识别差异
第 1 名患者的 R3、R4 区域类器官较容易引起 T 细胞活化,R2、R5 的反应较弱。来自不同区域的 2 种 TIL 制备物整体方向相近,但对 R4 的反应强度仍有差别。第 2 名患者的 R4 类器官引起的 T 细胞活化则超过 R7 的 2 倍。
研究再比较第 2 名患者 R7 区域中的不同克隆亚系,发现同一区域也包含反应强、中等和弱的模型。将强反应与弱反应类器官混合时,整体反应接近两者单独反应的平均值,未呈现由弱反应亚克隆决定整体反应的现象。
功能测量使用类器官解离后的肿瘤细胞与免疫细胞共培养,观察 CD137 活化标志及干扰素 γ(interferon-γ,IFN-γ)分泌。第 1 名患者的配对正常气道类器官未引起同样的 T 细胞反应;阻断 I 类主要组织相容性复合体(major histocompatibility complex class I,MHC-I)也会削弱反应,支持其肿瘤识别特征。
基因组和转录组数据未能单独识别逃逸亚克隆
全外显子组测序、染色体拷贝数与转录组比较显示,容易或不易被识别的亚克隆可形成不同遗传谱系。第 2 名患者的部分亚系仅有很少的独有点变异,拷贝数变化进一步区分了这些谱系。不同患者的表达变化方向也不相同,提示免疫逃逸可能经由不同路径形成。
不过,研究所查的已知免疫相关变异未能直接找出这些功能上逃逸的亚克隆。第 2 名患者的程序性死亡配体 1(programmed death-ligand 1,PD-L1)基础表达低,IFN-γ 引起的表达变化也不随 T 细胞反应强弱排列;阻断另一候选分子 MICA 后,T 细胞识别未见改变。
进一步比较提示,2 名患者分别涉及抗原依赖与抗原非依赖的逃逸。基因和表达检测描述了模型差异,但直接的免疫功能比较仍提供了这些资料没有清楚揭示的信息。
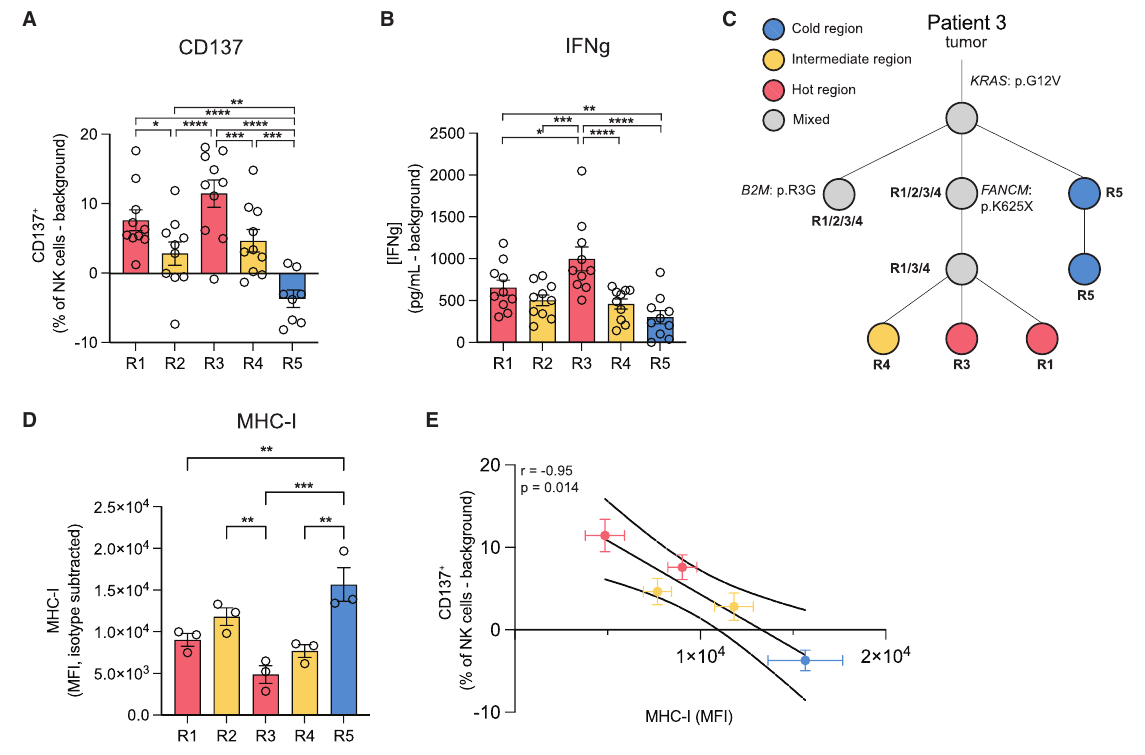
第 3 名患者的区域模型呈现不同 NK 反应
健康供者 NK 细胞与第 3 名患者的区域模型共培养后,R5 引起的 CD137 活化与 IFN-γ 分泌较低。谱系分析也把 R5 与 R1–R4 分开,说明免疫反应差异与不同亚克隆的演化背景相伴出现。
R5 类器官的表面 MHC-I 较高;在这名患者的 5 个区域模型间,MHC-I 表达与 NK 活化呈负相关,图 6 给出的相关系数为 −0.95,p=0.014。作者将该结果与 MHC-I 对 NK 活化的抑制作用联系起来。
图 6 的 NK 功能结果来自 4 位健康供者、5 次重复实验。CD137 分析各区域包含 8–10 次测量,IFN-γ 分析为 10 次测量,统计模型同时考虑供者与实验差异;表面 MHC-I 检测另报告 n=3。
窄屏可横向滑动查看完整图表。
多区域模型的建立率限制了可研究人群
获得这组模型并不容易。团队曾尝试培养 42 名患者的 166 个肿瘤区域,7 名患者至少有 1 个区域成功,患者层面的建立率约为 17%;其中只有 4 名患者获得多区域模型。第 4 名患者的模型传代后增殖明显减慢,未继续功能研究,最终分析集中在前述 3 名患者。
在原肿瘤中检测到的多数变异,也能在类器官中找到,但两者仍有部分差别。作者指出,分用于测序和培养的组织片段并不完全相同,建模过程中的选择性生长也可能造成差别。原组织还包含更复杂的免疫与基质环境,共培养实验主要分离出肿瘤细胞本身影响免疫识别的因素。
本研究的类器官均来自未经治疗的患者,尚未确定这种亚克隆差异在更大患者群中的出现频率。当前版本检测的是免疫识别与活化,没有比较具体免疫检查点药物的剂量反应;它为后续免疫治疗评价提供多区域取样和功能测量的模型依据。