
患者中脑类器官呈现酶和线粒体异常
GBA1 编码的葡萄糖脑苷脂酶(glucocerebrosidase,GCase)参与溶酶体脂质处理,部分变异与帕金森病(Parkinson’s disease,PD)有关。卢森堡大学(University of Luxembourg)等机构团队用患者来源的中脑类器官,研究这种变异是否在神经分化早期就造成代谢和细胞状态变化。
模型来自 3 位携带 GBA-N370S 杂合变异的 PD 患者和 3 位健康对照的诱导多能干细胞(induced pluripotent stem cells,iPSC)。每位供者使用 1 个克隆。其中 1 位患者还携带 LRRK2-G2019S 变异。
患者模型的 GCase 活性约下降 40%,但第 30 天的 GCase 蛋白总量没有相应下降,酶在溶酶体中的比例减少。自噬相关蛋白出现变化,线粒体检测也显示三磷酸腺苷(adenosine triphosphate,ATP)产生及耦联效率降低、质子泄漏增加。研究把酶活性、蛋白位置和代谢功能分别测量。
不同溶酶体酶的变化并不一致。患者模型的 β-己糖胺苷酶和 β-半乳糖脑苷脂酶活性未见显著差异,β-半乳糖苷酶活性却增加。GCase 总蛋白在第 30 天较稳定,到第 60 天则降低,说明检测时点和具体酶种都会影响结果。
代谢模型提示脂质变化,再由脂质组检验
团队用第 30 天的 RNA 测序资料,在 Recon3 人代谢网络上建立各细胞系的计算模型。这个分析采用 2 株对照与 2 株患者细胞,比较反应组成及高 ATP 需求条件下的可能代谢通量。胞外物质运输、鞘脂和甘油磷脂等通路出现差异,模型据此提出可进一步检验的代谢方向。
脂质组分析测量 16 类、超过 2,000 种脂质,采用 2 株对照和全部 3 株患者细胞,各有 4 次独立类器官生成实验。患者与对照的整体脂质谱分开,磷脂酰乙醇胺和磷脂酰胆碱减少;一些类别的总量与内部脂质种类则表现不同。
例如,己糖基神经酰胺(hexosylceramide,HexCer)总量没有显著差异,但部分脂肪酸组成的种类改变;鞘磷脂也出现总量较稳定、种类组成不同的情况。分析不能区分 HexCer 中的葡糖基和半乳糖基神经酰胺,作者因此保留这种测量限制。
磷脂酰肌醇的总量同样未明显改变,具体种类却不同,45 种脂质的丰度达到显著差异。作者讨论,这些变化可能影响磷脂信号和神经发育。计算模型提出的方向与实测脂质组成互相参照,作者认为,这些差异可能影响神经祖细胞的调节与分化。
类器官还按检测需要采用不同培养形式:有些嵌入基质,有些保持不嵌入状态。脂质组取嵌入模型并按 DNA 含量归一化,多巴胺及部分代谢测量采用不嵌入模型并按面积归一化。培养形式和归一化方式随具体检测而不同。
神经元减少,祖细胞却没有加快增殖
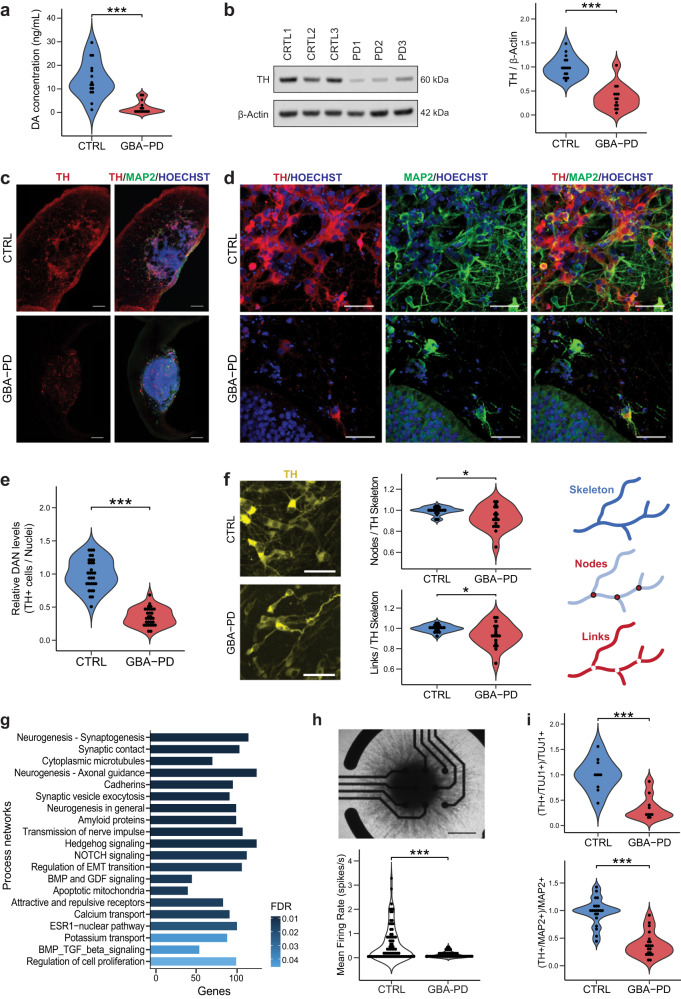
患者模型在第 60 天的胞外多巴胺和酪氨酸羟化酶蛋白水平较低,多巴胺能神经元比例在多个检测时点也减少。图像分析提示神经突网络的复杂度降低,第 15 天的电极阵列记录也显示较低电活动。一般神经元标志同样减少,但把多巴胺能细胞按全部神经元归一化后,其不足仍更明显。
与此同时,SOX2 和 FOXA2 相关祖细胞增多。团队检查类器官大小和增殖指标,没有发现相应增长;祖细胞中共表达 Ki67 与 SOX2 的细胞比例反而下降。这些结果更符合祖细胞分化受阻的解释。
流式分析显示 S 期细胞积累。DNA 合成标记的追踪中,对照祖细胞在 7 天后失去初始标记,患者模型仍保留,支持细胞周期停滞。这个结果把较低神经元生成与祖细胞自身状态联系起来。
窄屏可横向滑动查看完整图表。
氧化损伤和提前衰老为干预研究提出线索
患者类器官上清中的氧化 DNA 损伤产物增加,祖细胞的核内 LAMINB1 减少,异染色质相关信号改变,衰老相关 β-半乳糖苷酶染色增加。多项指标一起提示祖细胞的损伤及衰老状态,作者据此解释分化受阻。
作者提出,后续可以检验恢复 GCase 活性、调节自噬或脂质状态是否改善神经分化。重组酶和化学伴侣的药理救援属于这项研究提出的下一步,当前结果主要确立疾病表型及相关机制线索。
模型聚焦早期发育过程,帮助研究可能先于成年神经退变出现的细胞缺陷。药物开发中,酶活性、脂质种类、神经元生成和祖细胞状态可作为不同观察对象;是否能够逆转这些变化,需要在同一模型中进行后续干预比较。