
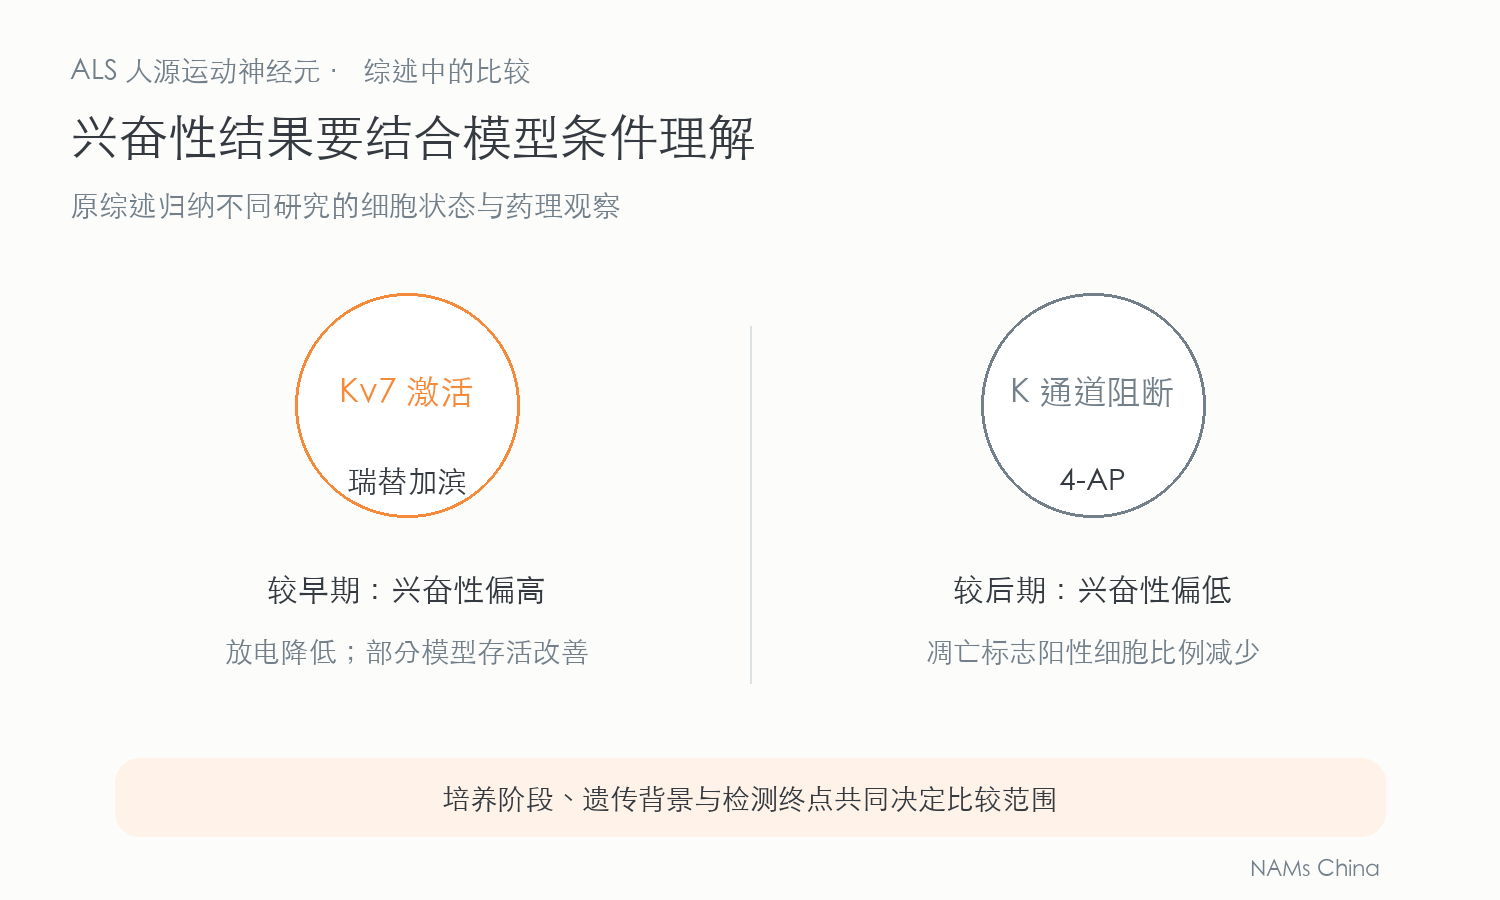
综述比较不同细胞状态下的药理结果
肌萎缩侧索硬化(amyotrophic lateral sclerosis,ALS)患者来源诱导多能干细胞(induced pluripotent stem cells,iPSC),可以分化为运动神经元,用于寻找疾病表型和候选干预。发表于 Neurobiology of Disease 的这篇综述,关注这些细胞实验的结果为何会随培养条件、遗传背景和检测指标而变化。
James Hawrot、Sophie Imhof 和 Brian J. Wainger 在文中比较了看似相反的药理观察:一些神经元兴奋性过高,另一些放电能力偏低,激活或阻断不同钾通道的药物都曾改善部分指标。作者要求先辨明每项研究的细胞状态及所测终点。
Kv7 激活剂与 4-AP 用于不同细胞状态
综述回顾,分化后较早的 2–4 周,部分 SOD1 A4V 运动神经元的放电高于对照;延迟整流钾电流减小,为这种变化提供了一个解释。Kv7 激活剂瑞替加滨(retigabine)降低了 SOD1、TDP-43 和 C9orf72 模型的放电,并改善 SOD1 A4V 神经元存活。
另一些在较后阶段观察的 C9orf72、SOD1 和 FUS 模型,兴奋性反而下降。其中一项研究用钾通道阻断剂 4-氨基吡啶(4-aminopyridine,4-AP)处理 SOD1 和 FUS 模型后,带有裂解型 caspase-3 凋亡标志的运动神经元比例减少。
这两类结果来自不同原研究,采用的变异、培养阶段和终点也不同。综述指出,要解释药物作用方向的差别,需要更细的时间过程、细胞死亡机制和培养密度等资料,基因变异本身也可能影响响应。
同一遗传背景的放电能力也会随时间改变
纵向观察提示,同一 ALS 患者来源模型的兴奋性可能随培养阶段改变。综述将时间变化列为解释相反结果的因素之一;体外培养阶段反映模型成熟过程,与患者病程属于不同时间尺度。
对于部分高兴奋与低放电结果,作者提出一个可能机制:持续过度兴奋可导致去极化阻滞,使运动神经元后来难以有效放电。这个假设只能解释部分差异,仍需按细胞系、遗传背景和检测终点分别判断。
临床皮层兴奋性的某些指标还受到中间神经元调控。孤立运动神经元的放电测量缺少相同回路条件;作者因此强调,在解释体外表型与患者神经生理之间的关系时,应辨明所测的是哪一类细胞或网络功能。
细胞组成和批次差异改变比较条件
不同实验室获得运动神经元的时间、纯度及成熟程度并不一致。即使用某一神经元标志富集细胞,培养物中仍可能留下其他神经元或非神经细胞;它们怎样影响目标细胞,往往描述不足。
同一方案内部也有多种差异来源,包括原始组织、样本处理、细胞克隆、传代和分化批次。作者指出,少量身份标志难以充分量化这些变异;C9orf72 重复长度在分化期间还可能改变,进一步影响不同批次的比较。
胶质细胞等邻近细胞也参与 ALS 病理。综述建议,先在单一细胞体系发现的靶点,可转入含星形胶质细胞等成分的共培养中复核;更复杂的类器官可补充其他细胞作用,也会引入更大的变异。
不同散发性 ALS 模型的药物响应有差异
综述讨论的一项研究先在 32 株散发性 ALS 来源细胞中比较多种病理表型。各细胞的退变时间和程度差异明显,一些模型培养 70 天后仍未出现显著神经突起减少。这个队列用于比较疾病表型,药物响应则来自其中另一个细胞系子集。
在罗匹尼罗(ropinirole)比较中,22 株散发性来源模型有 16 株响应,另 6 株未见相同效果。作者据此强调,遗传性模型中发现的候选药物还需在不同患者来源细胞中检验。这里的药物比较以 22 株细胞为范围,前述 32 株则用于病理表型比较。
作者还指出,所引筛选中,曾在大型 ALS 临床试验失败的 dexpramipexole 和 ceftriaxone,表现强于利鲁唑和依达拉奉。筛选排序因而需要结合模型所模拟的病理过程及人体研究结果解读,不能只凭体外保护信号判断候选价值。
可靠性需要跨细胞系与人体资料检验
综述把患者遗传资料、尸检组织及跨细胞系的表型重现,列为检验模型的重要依据。对于候选药物,还需要比较不同分化条件和细胞构成,判断结果能否持续重现。
这篇文章的落脚点是候选排序:聚集物、神经突起、存活和电活动都能产生筛选信号,但各自代表不同过程。作者主张先了解模型变异、确认表型与患者病理的对应,再决定哪些靶点或命中物值得进入下一步药物研发。