
缩短培养周期,也要检查感光细胞是否排对位置
视网膜类器官用于疾病模型和药物筛选时,培养周期长会限制实验规模。日本东京理科大学(Tokyo University of Science)、参天制药(Santen Pharmaceutical)和理化学研究所(RIKEN)的团队在 PLOS ONE 报告,通过改变多条发育信号的调控组合与阶段安排,使人诱导多能干细胞(induced pluripotent stem cells,iPSC)来源类器官在 90 天出现第三阶段视网膜类器官的形态及细胞标志。
研究从形态和细胞标志评价成熟度,具体观察:表面是否出现毛发样结构、外层是否形成清晰边界,以及视杆与视锥感光细胞标志物是否沿外缘排列。这样既检查培养时间,也检查产生的细胞是否位于预期位置。
3 种信号调节因子同时使用,随后改变组合
团队使用 1231A3 和 M8 2 条人 iPSC 细胞系。最初的神经视网膜诱导经修改后,约在第 10 天出现视网膜祖细胞;进入悬浮培养后,比较 Sonic hedgehog(SHH)通路激动剂 SAG、激活素 A(activin A)和全反式视黄酸(all-trans retinoic acid,RA)的不同组合。
早期模型也设置了身份检查。第 10 天,神经视网膜祖细胞簇同时表达 RAX 和 VSX2,外围则有表达 MITF 与 PAX6 的细胞,作者认为后者可能属于视网膜色素上皮前体。不同区域的身份与位置分开辨认,有助于确认随后培养的是目标视网膜组织。
在较早阶段,三者同时存在时,感光细胞及其前体的标志物 CRX 更集中于类器官外层。单用 SAG、单用 RA 或两者组合,在第 40 天并未呈现同样明显的 CRX 空间排列改变;activin A 单独使用可略提高 CRX 表达,与其他因子合用时作用更明显。
转录检测还揭示一项差别:第 20 天,RA 单独使用能够提高 CRX 基因表达,但第 40 天并未带来相同的蛋白表达变化。基因表达升高和组织分层改善,因此需要分别检测。
不同检测的时间与参照也各有安排:基因表达定量在第 20 天进行,先按 GAPDH 归一化,再与分化起始时的基线比较;蛋白定位则在后续切片中观察。基因转录、蛋白表达和组织空间结构提供互补信息,分别检查才能判断同一调控方案的阶段性效果。该基因表达比较每组设有 3 个生物学重复。
后期保留 SAG,有助于维持外层感光细胞标志
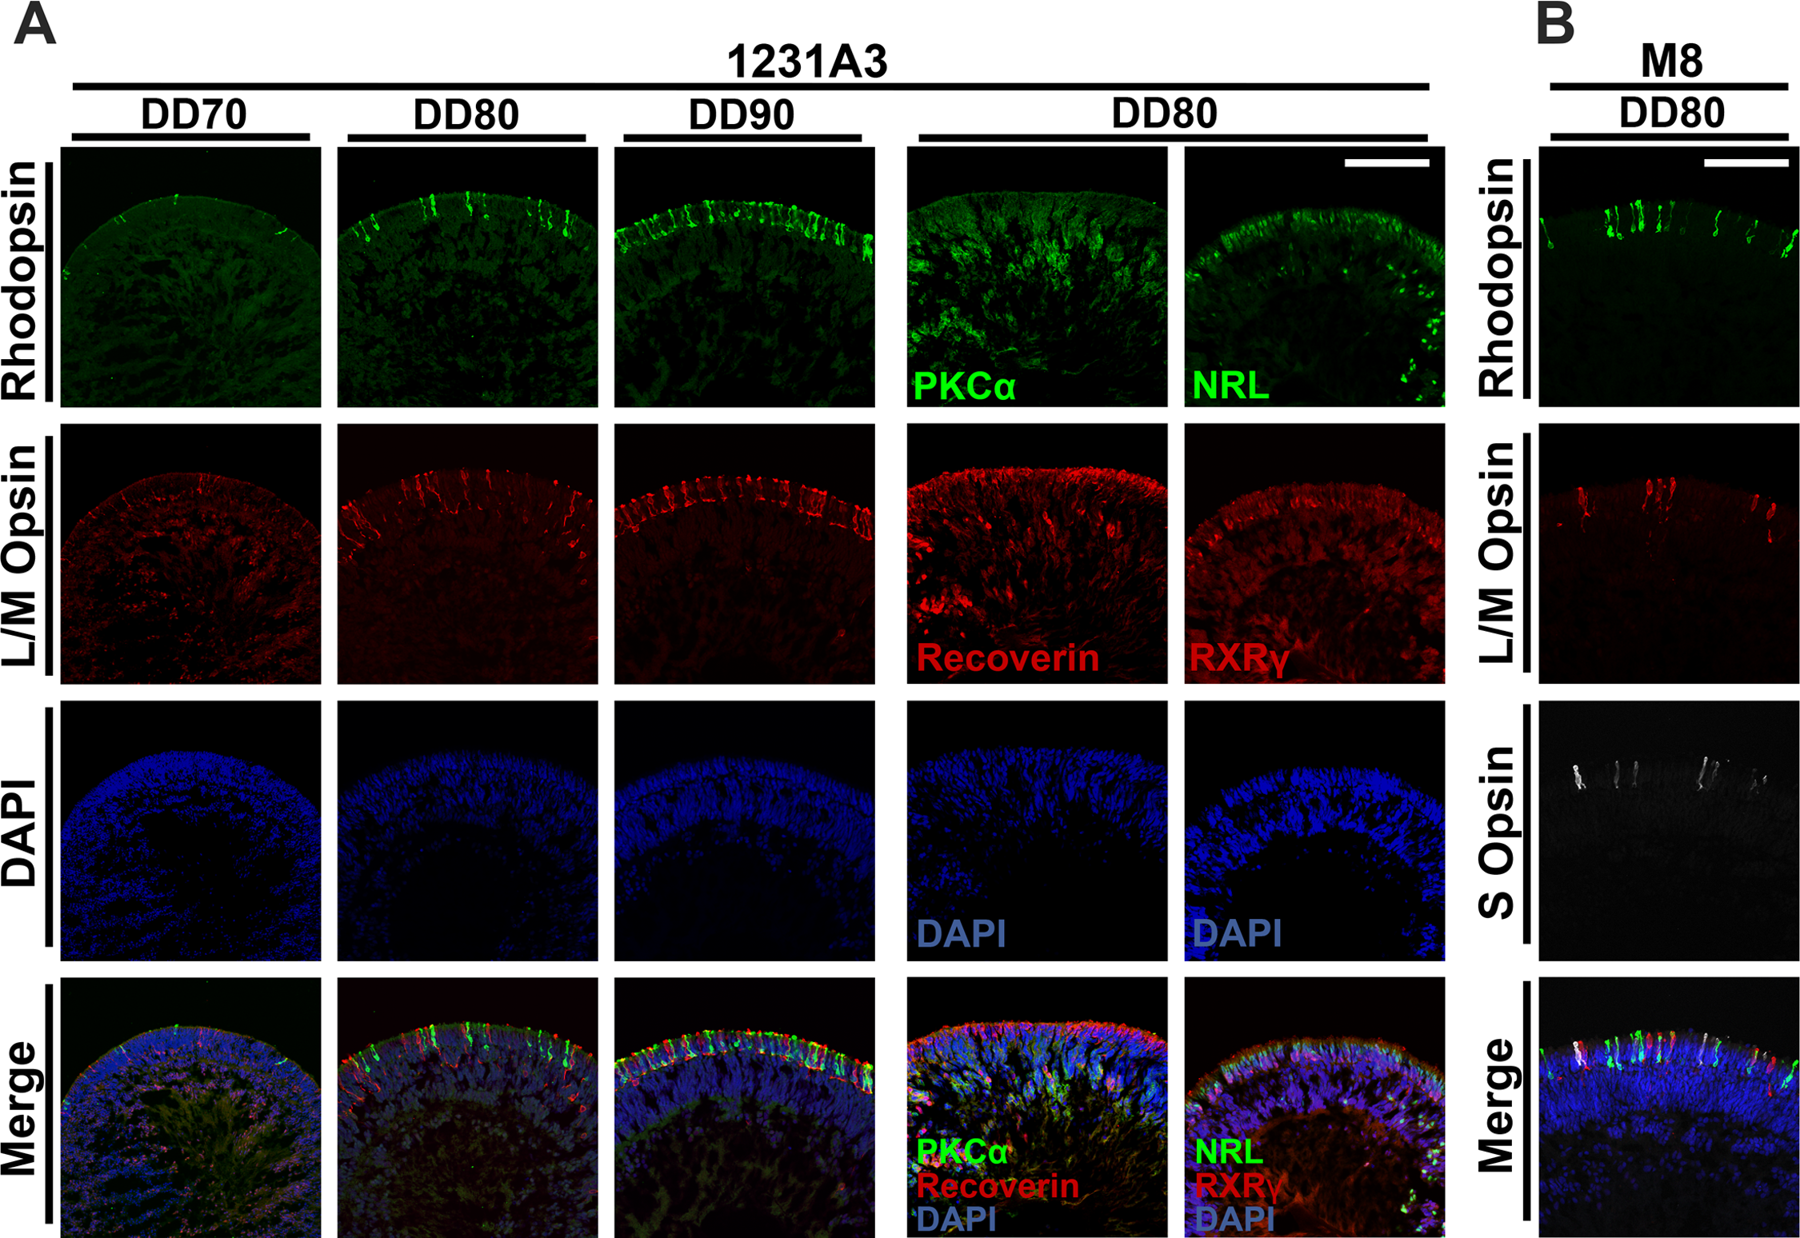
从第 40 天起,研究在去除 activin A 的基础上,继续比较 SAG 与 RA。到第 90 天,仅保留 SAG 的类器官维持了外层视紫红质和长/中波长视蛋白的排列;持续使用 RA,无论单用还是与 SAG 合用,都使这些标志物的表达及外层结构变差。
SAG 单独处理还减少了类器官内部错误位置出现的感光细胞。研究因此将后期的主要改进归结为:在保留外层感光细胞标志的同时,减少异位分化。相同信号在不同发育阶段的作用并不相同,培养安排不能只看某个因子通常具有的促分化作用。
2 条细胞系复核,成功率分别计算
1231A3 和 M8 都能在相近时间形成第三阶段形态。第 90 天的平均成功诱导率分别为 60.9% ± 9.9% 和 49.3% ± 6.1%,这里的“±”表示标准差;2 条细胞系分别进行了 8 次和 3 次独立实验。
第 70 天已可检测到视杆和视锥相关标志,第 80 至 90 天在外层排列更清楚。其他染色还检查了双极细胞、水平细胞、无长突细胞和 Müller 胶质细胞等组成。所选原图展示 2 条细胞系在不同阶段的感光细胞及其他视网膜细胞标志物。
较早出现的神经节细胞标志 BRN3 到后期减弱或消失,伴随 Müller 胶质细胞标志增加。作者认为这可能与神经节细胞缺少轴突连接有关;这是需要继续改进的模型组成问题,说明不同细胞类型的维持情况并不相同。
组织切片还显示,第 80 至 90 天外核层与内侧细胞核区域之间出现较清楚的分隔,符合外丛状层样结构。作者结合这些位置关系与视杆、视锥细胞标志判定第三阶段形态,从多个层面检查分化进程。
窄屏可横向滑动查看完整图表。
模型质量的改进,仍需按具体用途检查
论文以既往培养方法通常至少需要 120 天作为比较背景,本次的主要结果是 90 天出现相应形态与标志物分层。研究未把培养提速与某项药物预测性能直接对应起来;作者还提出,更多细胞系的适用性、单细胞层面的身份组成,以及疾病变异下的表现需要后续验证。